Dans les cellules somatiques, les chromosomes vont par paires, ainsi chaque gène est présent en deux exemplaires. On parle de diploïdie. Mais les allèles portés par les deux chromosomes homologues (constituant une paire) ne sont pas forcément identiques.
Pour un gène donné :
-Si les deux allèles (portés par les deux chromosomes homologues) sont identiques, alors on dit que l’individu est homozygote pour ce gène.
-Si les deux allèles sont différents, alors on dit que l’individu est hétérozygote pour ce gène.
Si l’individu est hétérozygote, alors il n’y a en général qu’un des deux allèles qui s’exprime (donc qui a une influence sur le phénotype) : il s’agit de l’allèle dominant. L’autre allèle, celui qui ne s’exprime pas, se nomme allèle récessif.
Il est possible que les deux allèles s’expriment conjointement, dans ce cas on dit que les deux allèles sont codominants.
Chaque individu crée des gamètes grâce au processus de la méiose. La méiose comprend une division réductionnelle qui va permettre de diviser par deux le nombre de chromosomes : ainsi, les gamètes n’ont plus que la moitié des chromosomes (un par paire). On parle d’haploïdie.
Lors de la fécondation (= rencontre des gamètes), le gamète mâle et le gamète femelle mettent en commun leur matériel génétique. Ainsi, la diploïdie est rétablie. En conséquence, pour chaque paire de chromosomes, un chromosome est d’origine maternelle, tandis que l’autre est d’origine paternelle.
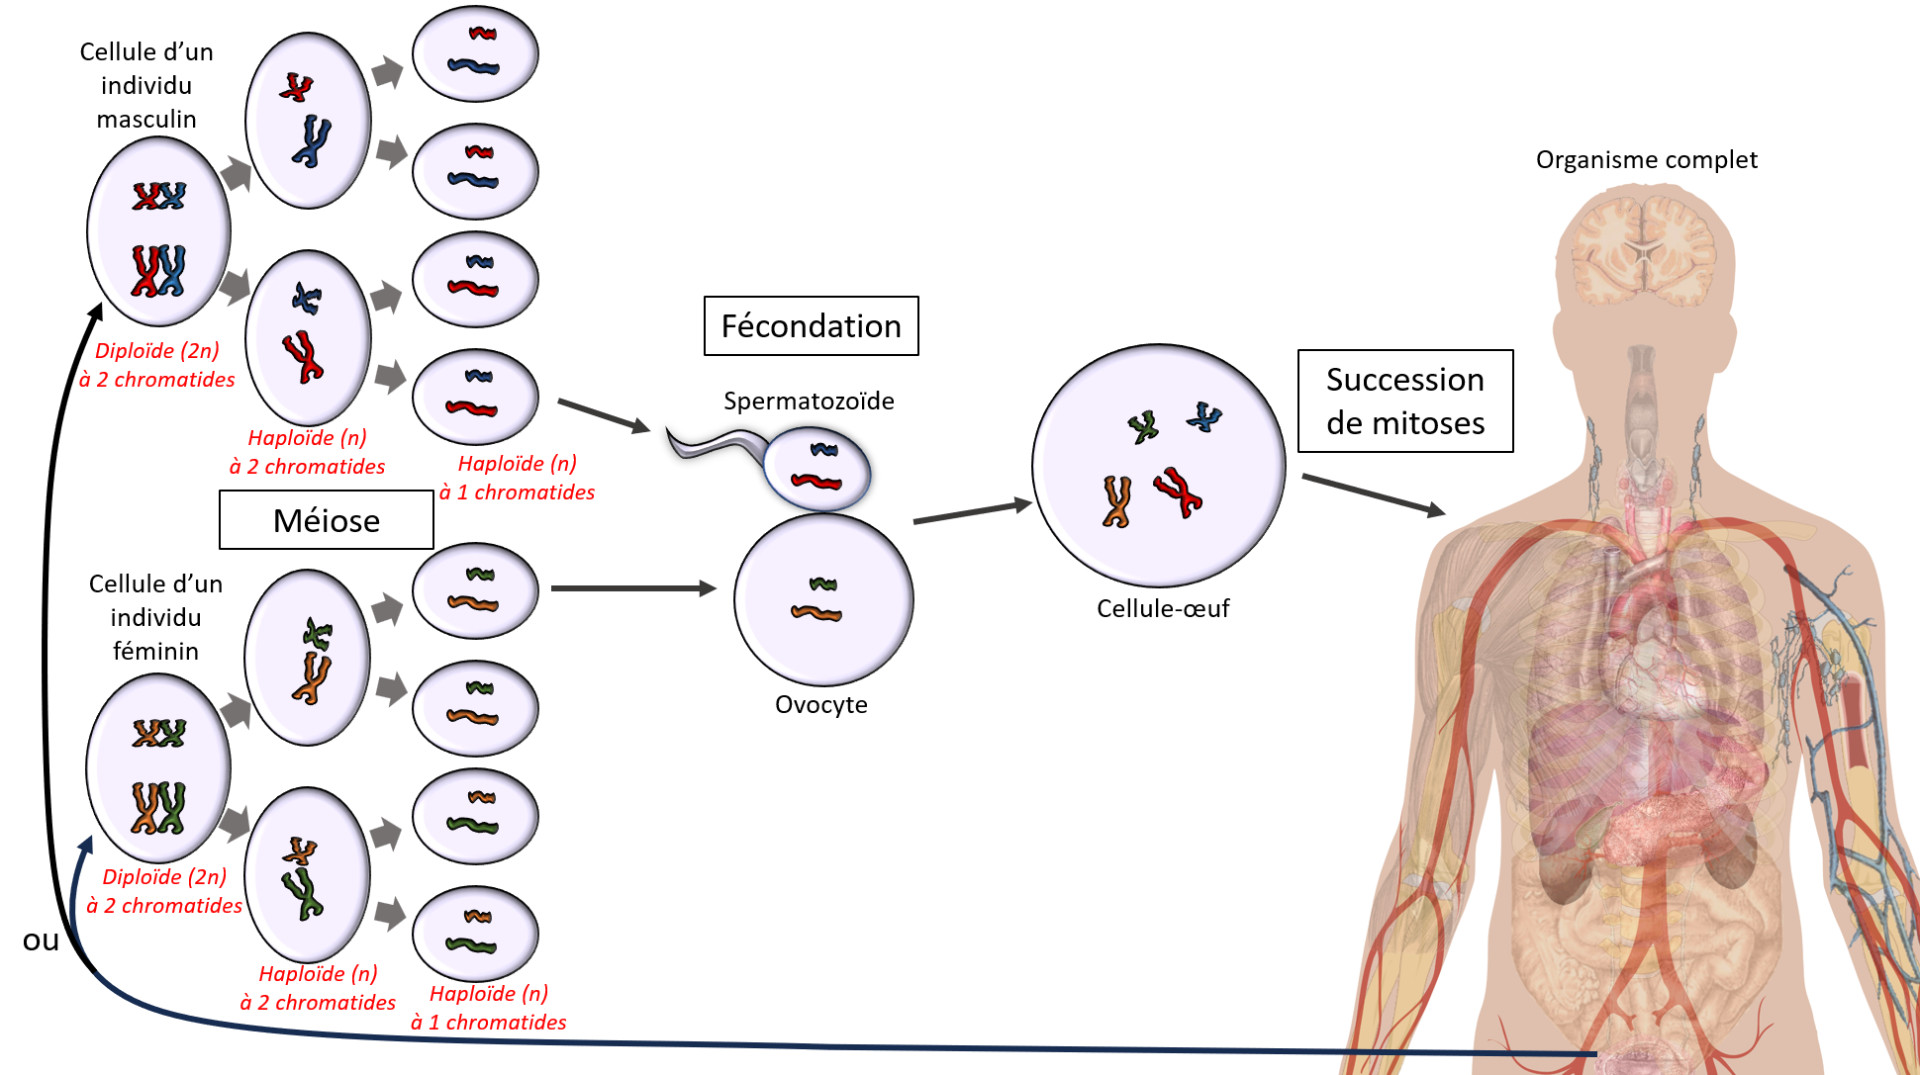
Schéma du cycle de la reproduction sexuée
Les chromosomes homologues ont généralement les mêmes gènes. Mais il existe des chromosomes pour qui ce n’est pas le cas : les chromosomes sexuels. Il s’agit des chromosomes responsables du déterminisme du sexe, encore appelé gonosomes. Chez l’Homme, il s’agit des chromosomes X et Y.
Ainsi, la majorité des gènes présents sur le chromosome X sont absents sur Y. Un gène présent sur X et absent sur Y n’est présent qu’en un seul exemplaire : un tel gène est qualifié d’hémizygote.
Dans le cas de l’espèce humaine, l’identification des allèles portés par un individu se fonde en premier lieu sur l’étude d’arbres généalogiques. En s’appuyant sur les règles de transmission des caractères héréditaires, on peut ainsi déterminer si un caractère est à transmission autosomique ou gonosomique mais également dominante ou récessive et ainsi prédire les risques/chance pour un enfant à naître de posséder un génotype et donc un phénotype particulier.
Les avancées en matière de séquençage ADN (PCR et séquençage informatisé) permettent directement d’accéder au génotype des individus. La constitution de bases de données informatiques dans le cadre du projet génome humain a permis l’identification d’associations entre certains gènes mutés et certains phénotypes. Ceci permet de prédire un risque de transmission ou d’expression d’une maladie génétique, et d’évaluer des possibilités de traitement de ces maladies grâce à la thérapie génique.
La reproduction sexuée permet de générer des descendants dont les génotypes, donc les phénotypes, sont inédits. Elle permet en effet de brasser les allèles parentaux afin de générer un nombre presque infini de combinaisons nouvelles.
A la métaphase de la première division méiotique il y a une répartition aléatoire des chromosomes homologues de part et d’autre du plan équatorial. Lors de l’anaphase qui suit, la disjonction (= séparation) des homologues se fait de manière indépendante pour les différentes paires. Une cellule haploïde reçoit donc au hasard un chromosome de chaque paire et il y a ségrégation aléatoire des allèles.La reproduction sexuée permet de générer des descendants dont les génotypes, donc les phénotypes, sont inédits. Elle permet en effet de brasser les allèles parentaux afin de générer un nombre presque infini de combinaisons nouvelles.
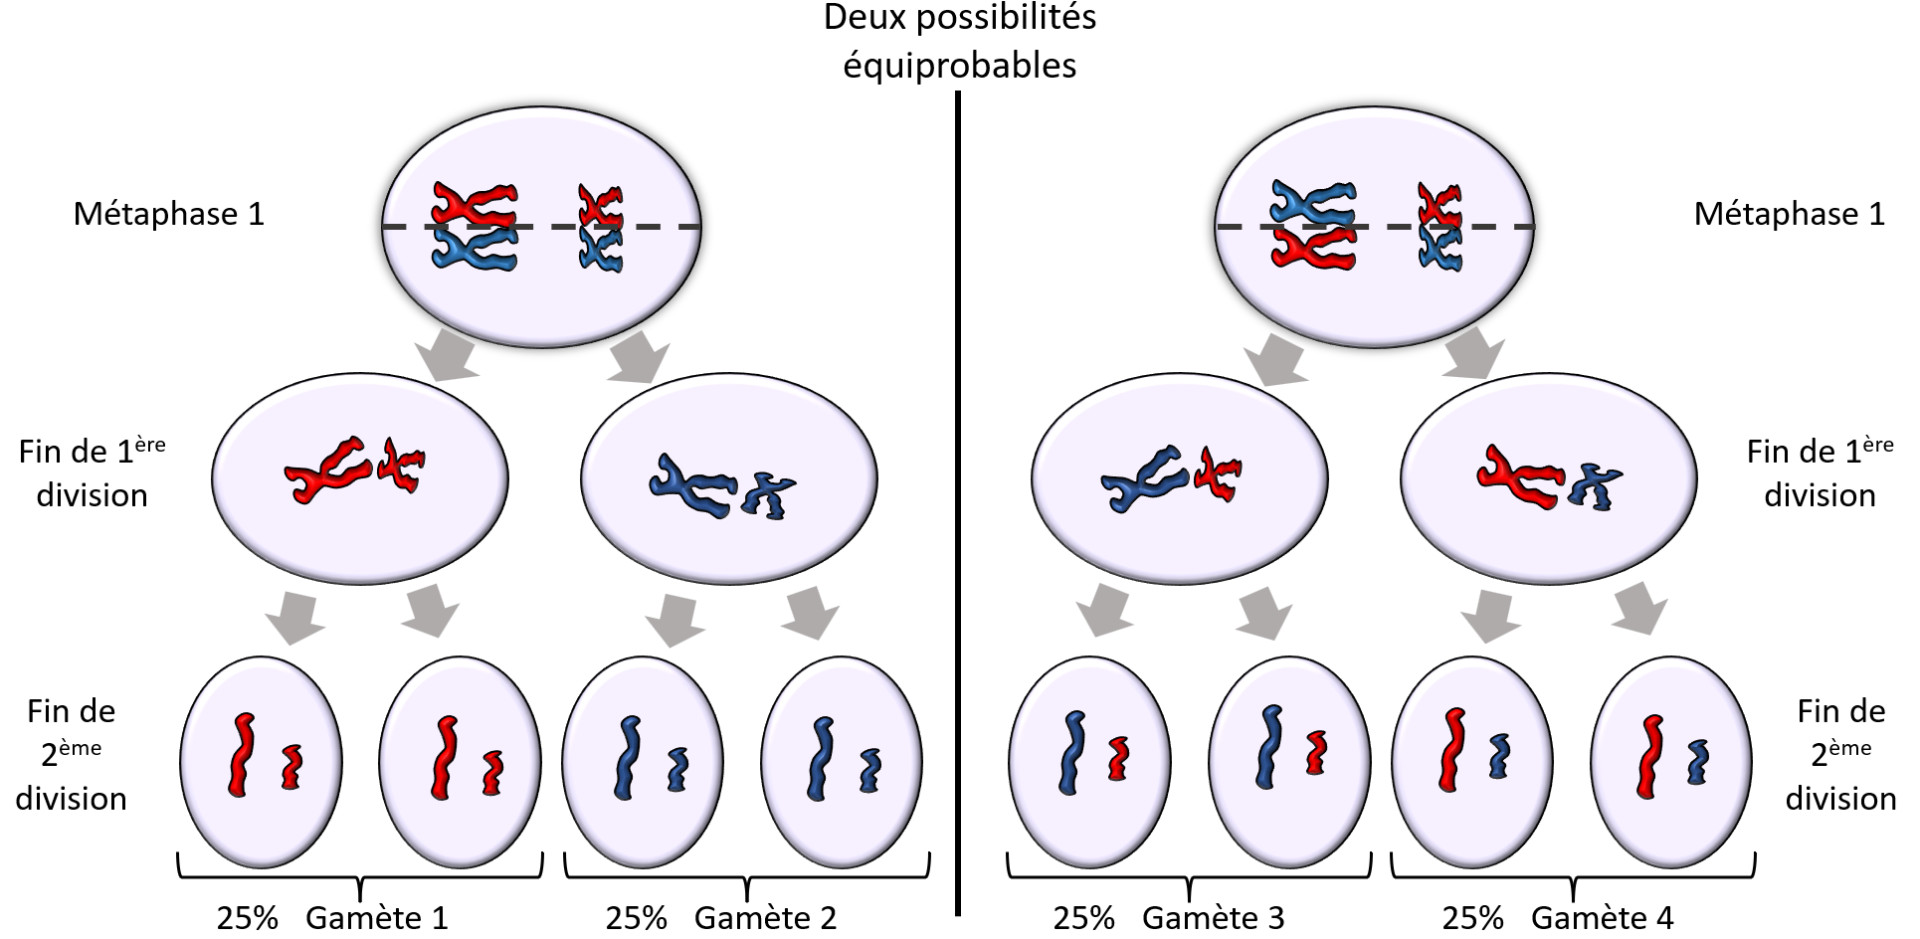
Schéma de la répartition aléatoire des chromosomes homologues au cours de la méiose
La méiose permet donc un brassage des allèles paternels et maternels et aboutit ainsi à une très grande variété de combinaisons alléliques donc à une très grande diversité de gamètes :
- avec 2 paires de chromosomes, on obtient 4 sortes de gamètes dans des proportions égales (4 × 25%).
- avec 3 paires, on obtient 8 sortes.
- avec n paires de chromosomes, on obtient 2n combinaisons possibles.
Par exemple chez l'Homme, il y a 223 = plus de 8 millions de possibilités.
La ségrégation aléatoire des chromosomes homologues crée de nouvelles associations de chromosomes, on parle donc de brassage interchromosomique.
Le brassage interchromosomique ne s’applique que sur des gènes indépendants, c’est-à-dire situés sur des paires de chromosomes différentes.
Pendant la prophase de première division de méiose, les chromosomes homologues sont appariés (rangés par paires) et ils peuvent échanger des fragments de chromatides pour former des chromosomes recombinés, Ce mécanisme est appelé crossing-over (ou enjambement). Ce phénomène n'est pas systématique (il peut avoir lieu… ou pas !).
·-Si la méiose a lieu sans crossing-over entre les 2 locus, on n’obtient que des gamètes de type parental (chromatides non remaniées) (A1 B1) et (A2 B2) en proportions équivalentes : 2 + 2.
·-Si la méiose a lieu avec crossing-over entre les 2 locus, on obtient 2 gamètes de type parental (A1 B1) et (A2 B2) et 2 gamètes de type recombiné (chromatides remaniées) (A1 B2) et (A2 B1).
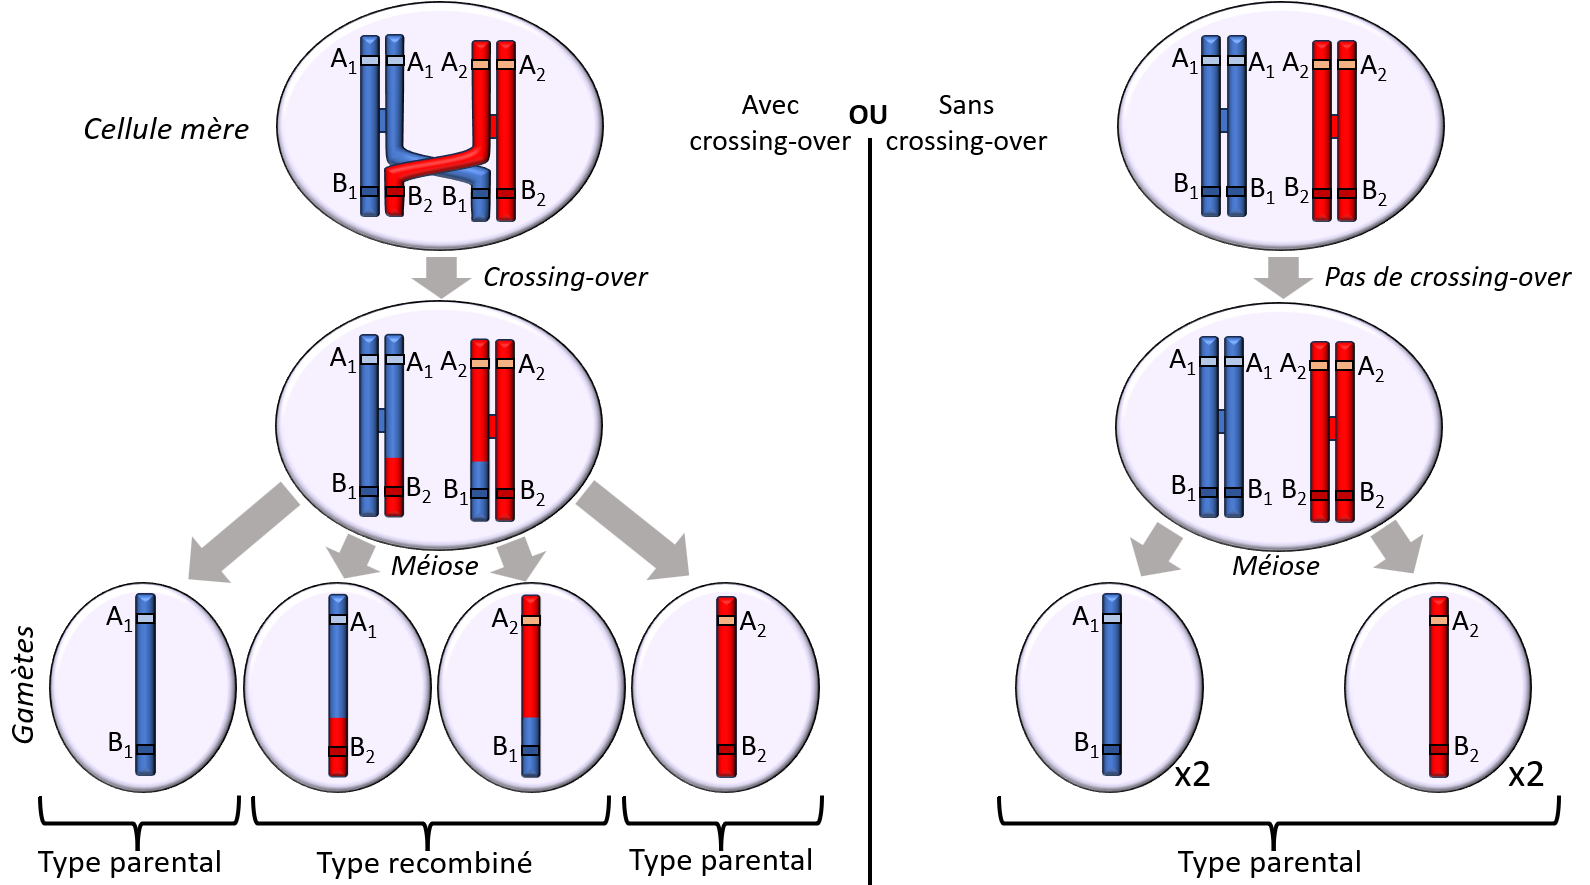
Schéma du brassage intrachromosomique
En partant d’un grand nombre de cellules diploïdes on obtient donc 4 sortes de gamètes en proportions inégales :
- Des gamètes de type parental, les plus fréquents car obtenus avec ou sans crossing-over.
- Des gamètes de type recombiné, moins fréquents car obtenus seulement par crossing-over.
La fréquence des recombinés dépend de la distance entre les locus des deux gènes : plus les locus sont éloignés, plus les crossing-over sont fréquents donc plus le pourcentage de gamètes recombinés est élevé (mais toujours < 50%).
Si les deux gènes sont très proches et qu'il n'y a aucun crossing-over entre eux alors on obtient uniquement des gamètes parentaux en proportions équivalentes : 2 × 50%.
Le crossing-over permet la formation de nouvelles associations d'allèles sur un même chromosome, on parle donc de brassage intrachromosomique.
Le brassage intrachromosomique ne s’applique que sur des gènes liés, c’est-à-dire situés sur la même paire de chromosomes.
Pour savoir si deux gènes sont liés ou indépendants, on peut réaliser un test-cross (encore appelé back-cross ou rétrocroisement). Un test-cross consiste à croiser une souche pure constituée d’individus homozygotes récessifs pour les deux gènes considérés avec une souche double hétérozygote.
Exemple de test-cross pour deux gènes avec deux allèles chacun :
Gène a : allèle a+ > allèle a-
Gène b : allèle b+ > allèle b-.
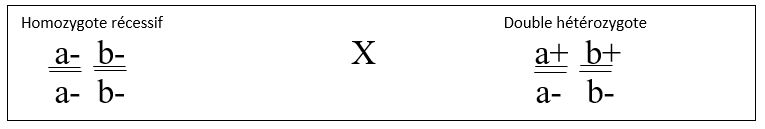
Un test-cross débouche en principe sur 4 descendants différents, deux descendants de types parentaux et deux descendants de phénotypes nouveaux.
-Si les proportions des descendants sont équivalentes (25% chacun), alors on peut en déduire que les gènes sont indépendants car c’est le brassage interchromosomique qui s’applique.
-Si les proportions des descendants sont plus élevées pour les phénotypes parentaux que pour les recombinés, alors on peut en déduire que les gènes sont liés car c’est le brassage intrachromosomique qui s’applique.
La rencontre des gamètes se fait au hasard entre un gamète mâle et un gamète femelle pris parmi tous les gamètes possibles formés par les deux parents.
Par exemple, chez l'Homme, il y a : 223 * 223 = 7. 1013 individus possibles sans tenir compte des crossing-over.
La cellule-œuf contient pour chaque gène un allèle venant du père et un allèle venant de la mère.
Toutes les rencontres possibles, donc toutes les combinaisons alléliques possibles, peuvent se schématiser par un échiquier de croisement.
La fécondation est à l'origine de nouvelles associations de chromosomes et d'allèles, différentes de celles des parents. Elle participe donc elle aussi au brassage génétique.