La reproduction sexuée permet le brassage des allèles existant chez les descendants, ce qui permet la présence d’une diversité génotypique au sein des population. Mais ces brassages ne permettent ni de créer de nouveaux allèles, ni de créer de nouveaux gènes. Les mutations permettent d’accumuler des variations dans les génomes et ainsi de créer de la diversité génétique.
Il peut arriver parfois des modifications à l’échelle du chromosome, qui découlent d’accidents génétiques : c’est ce qu’on appelle les mutations chromosomiques.
Il peut arriver des « accidents » au cours de la méiose. Ceux-ci peuvent aboutir à des mutations chromosomiques.
Dans certains cas, il peut y avoir des anomalies au cours de la méiose. Des crossing-over peuvent parfois être inégaux à cause d’appariements incorrects. Ceci aboutit à la délétion de gènes ou au contraire à la duplication de gènes chez les gamètes obtenus.
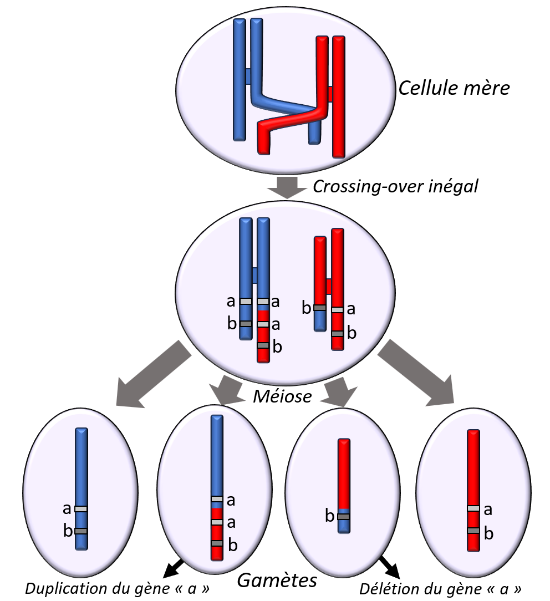
Schéma d’un crossing-over inégal
Lors d’une méiose normale on observe au cours de l’anaphase de première division une disjonction des chromosomes homologues. Mais dans certains cas la séparation des deux chromosomes n’a pas lieu et la paire concernée se retrouve dans une des cellules filles. La deuxième cellule fille sera ainsi dépourvue de ces chromosomes.
Parfois, on peut constater une anomalie lors de l’anaphase de la deuxième division : il arrive que les deux chromatides qui viennent de se séparer par rupture du centromère restent du même côté du plan équatorial de la cellule.
Ces anomalies entrainent lors de la fécondation qui suit une trisomie ou une monosomie.
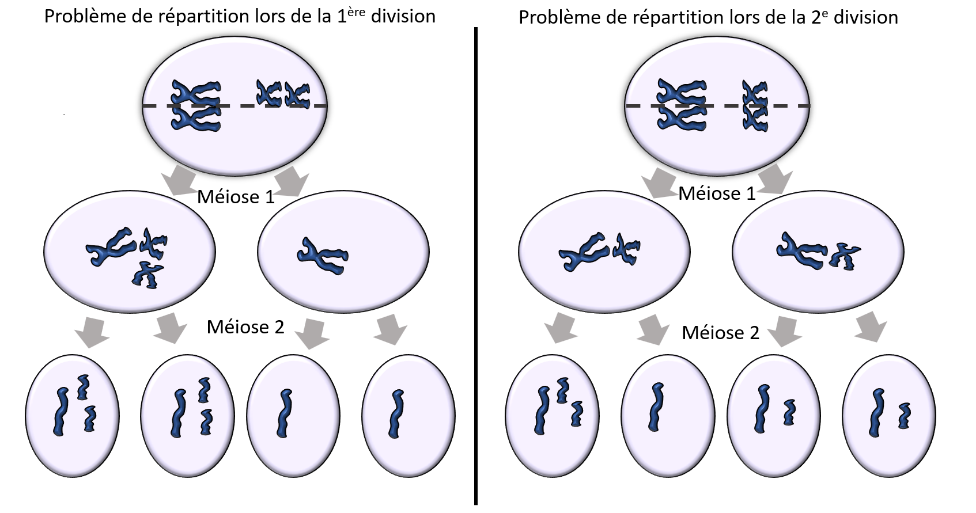
Problèmes de répartition des chromosomes lors de la méiose
D’autres accidents lors de la méiose peuvent entraîner plusieurs types de remaniements chromosomiques :
-Fission = scission d’un chromosome en deux chromosomes distincts.
-Fusion = soudure de deux chromosomes non homologues.
-Inversion = cassure dans un chromosome, retournement du fragment puis soudure.
-Translocation = cassure de deux portions de chromosomes non homologues, échange réciproque des deux parties, puis soudure.
Ces anomalies méiotiques peuvent entrainer des anomalies dans le génome du zygote après la fécondation. Dans la majorité des cas, ces anomalies empêcheront le développement de l’embryon, mais pas toujours : si le développement arrive à son terme, l’individu ainsi obtenu aura des caractéristiques différentes.
Les conséquences de ces anomalies sont en général néfastes pour les individus concernés : c’est le cas par exemple chez les individus atteints de trisomie (dont la plus répandue est la trisomie 21).
Cependant, sur le long terme, ces anomalies peuvent parfois être sources de diversité génétique, et donc peuvent favoriser l’évolution des espèces.
Les duplications de gènes entrainées par les crossing-over inégaux sont notamment responsables de la création des familles multigéniques : il s’agit d’ensembles de gènes très voisins tous issus du même gène ancestral par duplication. Ces familles multigéniques ont souvent un rôle très important dans l'évolution des espèces.
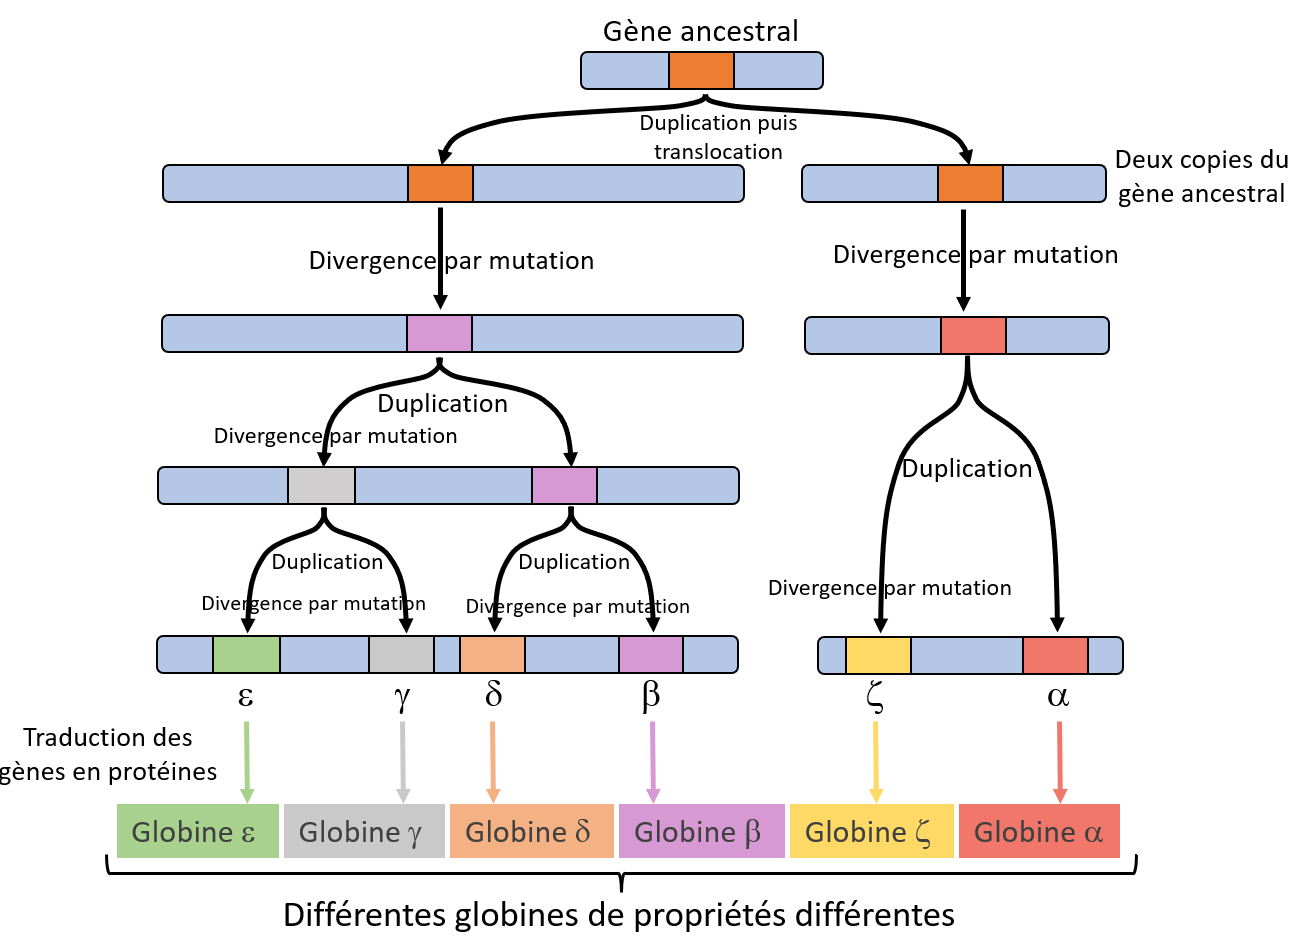
Processus de création de la famille multigénique des globines
Habituellement, les gènes sont transmis au sein de la même espèce, d’une génération à l’autre, lors de la reproduction : c’est le transfert vertical de gènes. Mais dans certains cas rares, il peut y avoir des transferts de gènes d’un organisme à l’autre, pas forcément au sein de la même espèce, ce que l’on qualifie de transferts horizontaux.
Les transferts horizontaux sont possibles grâce à l’universalité de la molécule d’ADN et du code génétique dans le monde vivant.
Chez les bactéries, ce type de transferts génétiques est très bien décrit et compris.
-Les bactéries sont en effet capables de réaliser le mécanisme de la conjugaison : cela consiste en la mise en place d’un pont cytoplasmique entre deux bactéries, puis à l’échange génétique de plasmides (un plasmide est un petit chromosome circulaire).
-Les bactéries peuvent également assimiler des fragments d’ADN présents dans le milieu dans lequel elles évoluent : c’est la transformation.
-Des fragments d’ADN peuvent également être échangés entre bactéries par l’intermédiaire de virus (les bactériophages) : c’est la transduction.
En effet quand les virus parasitent leur cellule cible, ils introduisent leur ADN dans celui de la cellule hôte parasitée pour qu’elle produise des virions (= copie du virus). Parfois dans ces néo-virus des fragments d’ADN de la cellule hôte peuvent être ajoutés au matériel génétique et être transmis à une autre cellule lors d’une future infection
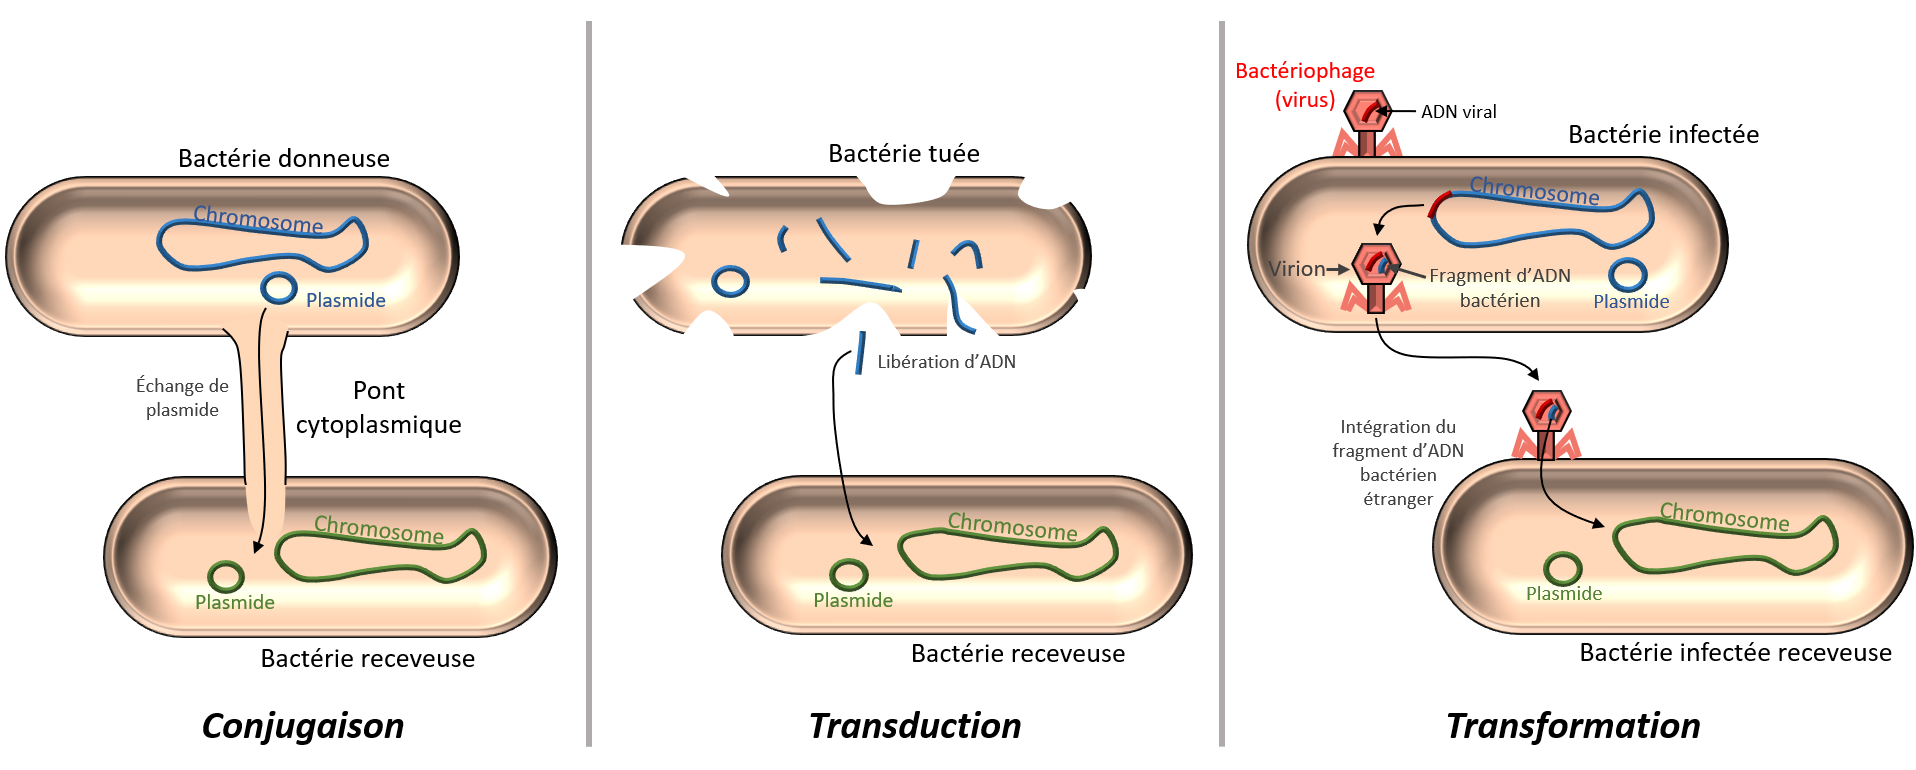
Les mécanismes de transferts de gènes chez les bactéries leur permettent notamment de s’adapter plus vite à leur milieu. Par exemple, la conjugaison leur permet d’échanger rapidement des gènes de résistance aux antibiotiques, ce qui permet à ces gènes de devenir de plus en plus fréquents dans les populations bactériennes…
La totalité des organismes pluricellulaires, qu’ils soient animaux ou végétaux, présentent dans leurs génomes des gènes étrangers qui résultent de transferts horizontaux.
Les processus de ces transferts ne sont pas encore très bien élucidés, mais les virus ont probablement un rôle important là-dedans.
Les virus sont des micro-organismes capables d’injecter leur patrimoine génétique dans des cellules hôtes, dont le métabolisme est alors détourné pour la création de nouveaux virus. Les cellules hôtes sont généralement détruites, mais il est possible dans certains cas que celles-ci perdurent. De même il se peut que des cellules hôtes soient des cellules germinales. Dans ce cas, si une cellule germinale infectée n’est pas détruite et donne un gamète impliqué dans une fécondation, la cellule-œuf obtenue contiendra le génome viral. Ainsi, l’organisme issu de cette cellule-œuf contiendra le génome viral dans chacune de ses cellules. Dans ce cas, la modification du génome deviendra pérennisée et héréditaire.
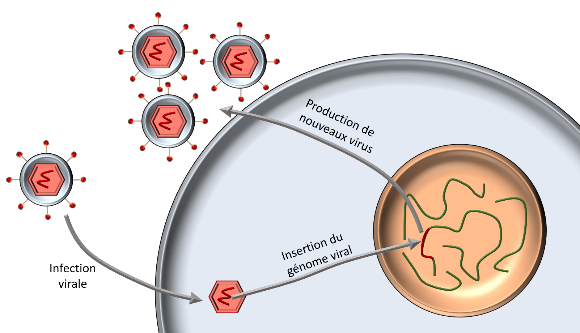
Le cycle viral
Au cours de l’évolution de l’espèce humaine de nombreux transferts horizontaux ont eu lieu. On évalue notamment que 10% du génome humain serait d’origine virale.
Certains de ces gènes viraux n’ont pas d’utilité, mais d’autres ont un rôle important. C’est le cas par exemple des gènes codant pour les syncytines, des protéines essentielles à la mise en place du placenta.
Les scientifiques sont aujourd’hui capables de transférer un gène d’un organisme à un autre de façon totalement artificielle. Cette technique se nomme transgénèse et permet d’obtenir des organismes génétiquement modifiés (OGM).
La transgénèse permet notamment l’amélioration des plantes cultivées en leur faisant acquérir de façon ciblée des caractéristiques avantageuses.
Elle permet aussi la production de molécules d’intérêt par des bactéries ou d’autres organismes unicellulaires. Par exemple, l’insuline (molécule utilisée pour traiter le diabète de type 1) est aujourd’hui produite par des bactéries génétiquement modifiées.
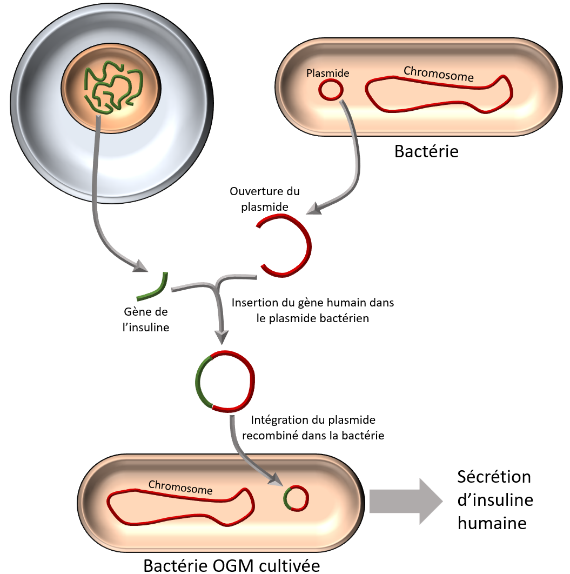
Transgénèse et production d’insuline
On nomme symbiose une association étroite et durable entre deux êtres vivants d’espèces différentes, dont les bénéfices sont réciproques (chaque protagoniste trouve un intérêt dans l’association, contrairement au parasitisme).
Parfois, l’association est tellement étroite que l’un des protagonistes (l’endosymbiote) vit à l’intérieur des cellules de l’autre (l’hôte) : on appelle ce type de symbiose une endosymbiose.
Les endosymbiotes apportent généralement à l’hôte des avantages au niveau nutritionnel de par leurs particularités métaboliques. En échange, l’hôte apporte à l’endosymbiote un cadre stable et sécurisé, voire certaines molécules d’intérêt.
Par exemple, les coraux sont des organismes animaux qui contiennent au sein de leurs cellules des zooxanthelles, des microalgues, qui leur permettent de faire la photosynthèse.
Les endosymbiotes sont en général internalisés au sein des cellules de l’hôte dans une vésicule cytoplasmique. Si l’endosymbiose dure suffisamment longtemps, il y a souvent une régression de certaines caractéristiques de l’endosymbiote qui deviennent inutiles (par exemple, les flagelles ou les parois cellulaires…). Ces régressions sont associées à la perte de certains gènes. Du fait de la proximité des deux protagonistes, il est fréquent qu’il y ait des transferts horizontaux de gènes entre l’endosymbiote et le noyau de l’hôte.
La théorie endosymbiotique est une théorie aujourd’hui largement admise dans la communauté scientifique qui suggère que les mitochondries et les chloroplastes contenus dans les cellules eucaryotes proviendraient de l’endosymbiose de bactéries.
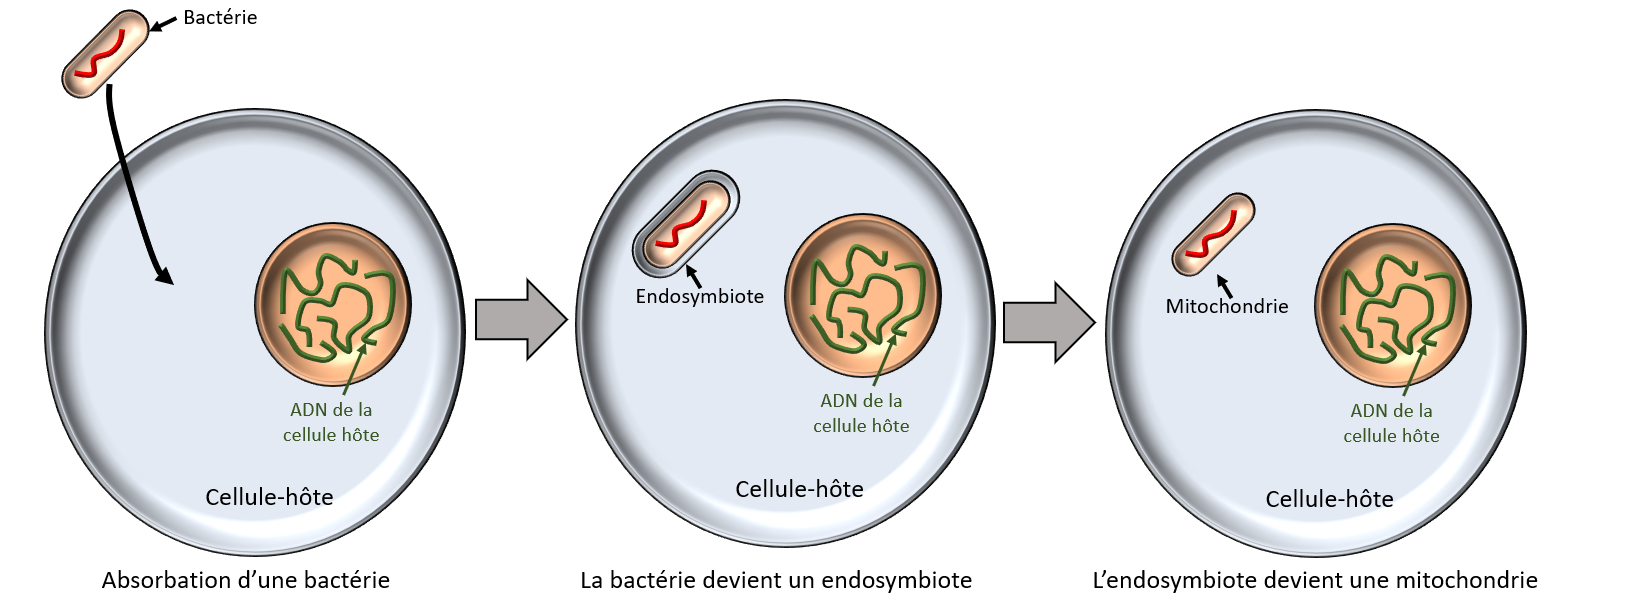
La théorie endosymbiotique
Plusieurs arguments ont permis d’établir cette théorie :
-La taille similaire entre ces organites et les bactéries.
-Le fait que les organites soient entourés par une double membrane ; la membrane externe serait ainsi la vésicule cytoplasmique.
-Les similitudes entre la chimie de la membrane interne et les membranes bactériennes.
-La présence d’ADN au sein des mitochondries et des chloroplastes, dont l’information génétique présente de fortes similitudes avec celle des bactéries, et qui se réplique et s’exprime de manière similaire à ce que l’on trouve dans les bactéries.
-La division des mitochondries et des chloroplastes est indépendante de la division cellulaire et présente des similitudes avec les divisions bactériennes.
Les chloroplastes résulteraient de l’endosymbiose de bactéries particulières capables de réaliser la photosynthèse : les cyanobactéries. La présence de pigments similaires entre cyanobactéries et végétaux atteste bien de cette hypothèse.
L’endosymbiose dont résultent les mitochondries daterait d’entre 1,5 et 2 milliards d’années. Celle à l’origine des chloroplastes serait plus récente.